INTRODUÇÃO
A criptococose é uma doença infecciosa presente mundialmente com mais de 70 espécies descobertas, mas apenas duas espécies são consideradas patogênicas em humanos: Cryptococcus neoformans e Cryptococcus gattii1,2. A grande maioria das infecções por cryptocócicas são causadas por C. neoformans principalmente em pacientes imunocomprometidos. As células epiteliais das vias aéreas são as primeiras células hospedeiras com as quais o Cryptococcus spp. tem contato próximo3,4.
As infecções pulmonares em indivíduos saudáveis geralmente se resolvem por conta própria; no entanto, em indivíduos com condições de imunossupressão, como pacientes com HIV/AIDS, pacientes com transplante sólido e pacientes com câncer, o C. neoformans pode ter mais facilidade em escapar da resposta imune e dos pulmões, espalhando-se pelo corpo até atingir o local onde tem predileção - o cérebro, causando meningite criptocócica ou meningoencefalite5,6.
A célula A549, linhagem epitelial alveolar humana tipo II, originada de tecido de carcinoma pulmonar de paciente humano, é utilizada para estudos farmacológicos, toxicológicos e microbiológicos4,7,10, incluindo estudos com C. neoformans3-14.
Neste estudo, avaliamos, in vitro, o efeito de C. neoformans sobre a ativação de A549, como a produção das citocinas IL-6, IL-8, IL-10 e TGF-β1, e a ativação da fosforilação de transcrição dos fatores ERK1/2 e NF-kB, além da infectividade fúngica na célula.
MÉTODOS
Células
Células A549 (doadas pelo Dr. David Bruce Levy do Brigham and Women's Hospital) foram cultivadas em meio DMEM/F-12 (Gibco - Life Technologies) mais 10% de soro fetal bovino (FBS) (Gibco - Life Technologies) e 1% de antibióticos (penicilina, estreptomicina e gentamicina) (Gibco - Life Technologies) em frascos de cultura (TPP) com área de crescimento de 75 cm2 e volume de 65 mL, mantidos em estufa a 37 °C com 5% de CO2.
C. neoformans
Todos os experimentos foram realizados com C. neoformans var. grubii cepa H99 (ATCC MYA-4564). O C. neoformans foi cultivado e mantido em ágar Sabouraud dextrose (BD Biosciences). Para a estimulação celular, uma única suspensão de colônia em caldo Sabouraud dextrose (BD Biosciences) foi preparada após o crescimento até a fase estacionária inicial (48h) a 37 °C.
Estimulação
Células A549 (1 x 10⁵ cel/mL) foram incubadas em placas de 96 poços e estimuladas com C. neoformans (Multiplicidade de Infecção - MOI 1:100; 100 fungos para 1 célula)8 por 24h.
Produção de IL-6, IL-8, IL-10 e TGF-β1
Os sobrenadantes foram coletados 24h após a estimulação, e as concentrações de IL-6, IL-8, IL-10 e TGF-β1 foram medidas por ensaios de imunoabsorção enzimática (ELISA) de acordo com as instruções do fabricante (BD Pharmingen, San Diego, CA, EUA).
Expressões de fosfo-NF-B e fosfo-ERK1/2
As vias de sinalização do fosfo-NF-B e ERK1/2 foram avaliadas por citometria segundo Oliveira et al. (2015)12. Resumidamente, 24h após a estimulação com C. neoformans, as células foram fixadas com BD Cytofix Buffer (4%) durante 10 min a 37 °C. Após a centrifugação, as células foram permeabilizadas em paraformaldeído gelado por 30 minutos e então coradas com monoclonais anti-fosfo-NF-B ou anti-fosfoERK1/2 (BD Biosciences Pharmingen-Phosflow, EUA) ou seu isotipo correspondente por 60 minutos seguido de incubação com o anticorpo secundário marcado com FITC ou PE por mais 45 minutos no escuro. As células foram então lavadas, ressuspensas e submetidas a análise.
Uma expressão de moléculas sinalizadoras intracelulares fosforiladas em 50.000 células viáveis foi analisada por citometria de fluxo (FACSCalibur; BD Biosciences Pharmingen).
Fagocitose in vitro
Para determinar os níveis de internalização de C. neoformans durante as adesões com células A549, o método de Pereira et al. (2021)9 foi seguido. Resumidamente, as células de levedura foram marcadas com isotiocianato de fluoresceína (FITC) a 0,1 mg/mL, no escuro, por 30 min, e após lavagem em PBS. Células A549 foram estimuladas com C. neoformans por 24h a 37 °C, seguido de lavagem com PBS (3 vezes usando 1 mL cada) para remoção de fungos não aderentes. Alguns dos complexos de células hospedeiras de fungos foram tratados por 10 min a 25 °C com azul de tripano (200 μg/ml). O azul de tripano é um agente supressor da fluorescência derivada do FITC e, como não é capaz de atingir o compartimento intracelular de células viáveis, esse corante é útil para discriminar C. neoformans intracelular e associado à superfície, extinguindo, assim, a fluorescência de não internalizados células. O azul de tripano não ligado foi removido por lavagem extensa com PBS e os complexos foram então analisados por citometria de fluxo.
Análise estatística
A análise estatística foi realizada com o software "Prisma" versão 5 da Graphpad (http://www.graphpad.com). Os resultados foram expressos como média ± erro padrão da média. A avaliação dos resultados foi realizada pela análise de variância (ANOVA), seguida do pós-teste de Tuckey. Valores de p inferiores a 0,05 foram considerados estatisticamente significativos.
Resultados
A produção de IL-6 e TGF-β1 foi aumentada em células A549 infectadas com C. neoformans
Primeiramente, avaliamos o efeito de C. neoformans na produção das citocinas IL-6, IL-8, IL-10 e TGF-β1 em A549. Células A549 infectadas com C. neoformans aumentaram significativamente a concentração de IL-6 (Figura 1A) e TGF-β1 (Figura 1D) quando comparadas ao grupo-controle. Não foram observadas alterações na produção de IL-8 (Figura 1B) e IL-10 (Figura 1C) entre os grupos.
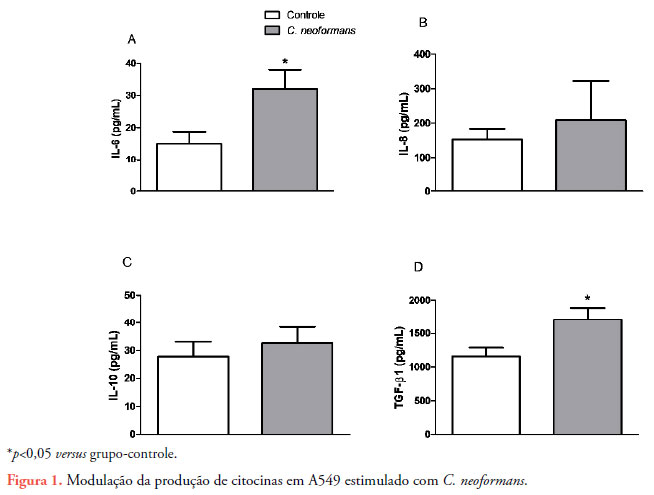
Células A549 foram estimuladas com C. neoformans (MOI 100) por 24h. As concentrações de IL-6 (A), IL-8 (B), IL-10 (C) e TGF-β1 (D) foram avaliadas por ELISA. Os dados são a média ± SEM de três experiências independentes em triplicado (n=10).
C. neoformans aumentou a fosforilação de ERK1/2 e NF-B em células A549
C. neoformans aumentou significativamente a fosforilação de ERK1/2 (Figura 2A) e NF-B (Figura 2B) em células A549 em comparação com grupos de controle.

Após 24h, as células foram recuperadas e a citometria de fluxo mostrando porcentagens de ERK1/2 (A) e NF-B (B) foram analisadas. Os dados são a média ± SEM de três experiências independentes em triplicado (n=4).
Adesão e internalização de C. neoformans em células A549
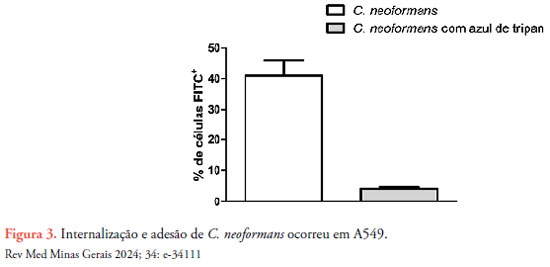
O número de células internalizadas por C. neoformans é muito menor do que a quantidade aderida nas células A549.
C. neoformans foi incubado com FITC (0,1 mg/mL) no escuro por 30 min. A549 foram estimulados com C. neoformans (MOI 100). Após 24h, as células foram recuperadas e analisadas por citometria para determinar a quantidade na superfície (barra branca) e intracelular (barra cinza) de C. neoformans foi então analisada por citometria de fluxo. Os dados são a média ± SEM de três experiências independentes em triplicado (n=8).
DISCUSSÃO
O papel das células epiteliais na resposta inflamatória a C. neoformans é pouco explorado. C. neoformans é capaz de modular diversas respostas pulmonares e pode exacerbar ou limitar a ativação de certos mediadores das células epiteliais. Embora existam vários modelos animais de infecções criptocócicas, as diferenças entre células pulmonares de camundongos e humanos prejudicam uma visão mais ampla de como C. neoformans interage com o epitélio pulmonar15. A célula A549, uma linha celular derivada de um adenocarcinoma pulmonar humano16, tem se mostrado muito útil em diversos estudos farmacológicos, toxicológicos e microbiológicos15,9 inclusive em C. neoformans3.
A IL-6 desempenha um papel fundamental na inflamação e infecção16. Camundongos knockout para IL-6 infectados com C. neoformans aumentaram a quebra da barreira hematoencefálica, causando morte mais rápida em comparação com camundongos selvagens17. Reforçando isso, em um estudo de pacientes positivos para o vírus da imunodeficiência humana com meningite criptocócica, a alta concentração de IL-6 no líquido cefalorraquidiano foi associada a respostas protetoras do hospedeiro, como controle de infecção e integridade da barreira hematoencefálica18. C. neoformans aumentou a produção de IL-6 em células A549 correspondendo a uma resposta inflamatória imune inata à infecção fúngica. Como a IL-6 desempenha um papel significativo na inflamação das vias aéreas e no controle de infecções fúngicas, sua produção pelas células imunes inatas das vias aéreas poderia favorecer os mecanismos de proteção das vias aéreas e diminuir a suscetibilidade ao desenvolvimento criptocócico.
A IL-8 é um mediador quimiotático, principalmente para neutrófilos, que atua na defesa do hospedeiro contra fungos, bactérias e vírus19,20,21. No trabalho de Guillot et al. (2008)22, observou-se que C. neoformans acapsulares viáveis são potentes ativadores de células epiteliais brônquicas humanas (BEAS-2B), induzindo uma secreção significativa de IL-8, que corresponde a uma resposta inflamatória aguda na célula. No entanto, em nosso experimento, nenhuma alteração significativa na produção de IL-8 foi observada entre as células controle e infectadas.
A IL-10 é uma citocina com efeitos anti-inflamatórios e imunossupressores, auxiliando na redução da inflamação. O aumento da produção de IL-10 em amostras de sangue periférico de pacientes com criptococose geralmente está relacionado à disseminação da doença e mortalidade precoce22,23. A IL-10 faz parte da imunidade Th2 relacionada à disseminação da doença no hospedeiro. C. neoformans não aumentou a produção de IL-10 em células A549. Esse resultado pode sugerir que C. neoformans não modula o mecanismo anti-inflamatório da IL-10 em células A549 em favor da suscetibilidade à infecção criptocócica.
O TGF-β1 é uma citocina multifuncional que desempenha papel central na patogênese de diversas doenças crônicas na regulação de respostas inflamatórias24,25. C. neoformans aumentou a produção de TGF-β1 em células A549. O aumento de TGF-β1 pode contribuir para a persistência da infecção criptocócica durante as fases crônicas da infecção, conforme visto em Shao et al. (2005)26.
O NF-κB atua na inflamação e na resposta do hospedeiro a várias infecções26,27. Pereira et al. (2021)9 observaram que a atividade de NF-κB em células epiteliais brônquicas (células BEAS-2B) poderia ser desnecessária para o desenvolvimento de inflamação das vias aéreas em resposta a C. neoformans. Este trabalho está de acordo com McDermot et al. (2018)28, que demonstraram, no modelo camundongo de criptococose, que a sinalização de NF-κB em células epiteliais pulmonares é totalmente dispensável para a inflamação das vias aéreas em resposta a C. neoformans. Em nosso estudo, C. neoformans aumentou a ativação de fosfo-NF-kB em células A549 quando comparado aos controles. Esses resultados estão em desacordo com estudos anteriores e podem estar relacionados a diferenças de modelos (in vivo e in vitro) ou células (células BEAS-2B e A549) utilizadas. No entanto, esses resultados estão associados a um aumento de IL-6, que pode ser produzida pelo NF-κB28,29.
Uma outra importante via de sinalização para a inflamação é a quinase regulada por sinal extracelular 1/2 (ERK), que participa de importantes processos regulatórios como adesão celular, progressão do ciclo celular e migração celular30. Estudos demonstraram que a cápsula GXM de C. neoformans tem a capacidade de diminuir a ativação de ERK1/2 em camundongos CD45+ tipo selvagem4,10. Pereira et al. (2021)9 observaram que a atividade de ERK1/2 em células epiteliais brônquicas (células BEAS-2B) pode ser desnecessária para o desenvolvimento de inflamação das vias aéreas em resposta a C. neoformans. Observamos um aumento da fosforilação de ERK1/2 por C. neoformans em células A549. As diferenças entre nossos resultados e os demais podem estar relacionadas aos tipos de células utilizadas nos experimentos e modelos in vitro e in vivo, bem como ao uso de polissacarídeo fúngico em vez de células fúngicas vivas. O aumento de ERK1/2 poderia estar associado ao processo inflamatório em favor do controle da infecção por C. neoformans nas vias aéreas.
A capacidade das células criptocócicas de aderir à superfície pulmonar do hospedeiro é importante para o estabelecimento da doença3,4. Vários artigos foram publicados tentando investigar os mecanismos de adesão e internalização do fungo a C. neoformans em células epiteliais do trato respiratório5,31-34. Observamos tanto internalização como adesão de C. neoformans em células A549, o que poderia favorecer as lesões primárias nas vias aéreas35,36.
CONCLUSÃO
O epitélio pulmonar é um componente da resposta imune inata e demonstra um papel multifuncional além de uma barreira física protetora entre o ambiente externo e os tecidos através da liberação de uma série de mediadores, como citocinas e quimiocinas, que podem orquestrar e influenciar as respostas imunes inatas e adaptativas na modulação da inflamação das vias aéreas. Dessa forma, nossos resultados demonstraram que C. neoformans é capaz de ativar e interagir com células epiteliais basais alveolares do adenocarcinoma humano, modulando a resposta imune inata das vias aéreas a seu favor para promover o desenvolvimento de infecções criptocócicas.
CONTRIBUIÇÃO DOS AUTORES
As contribuições dos autores estão estruturadas de acordo com a taxonomia (CRediT) descrita abaixo:
Conceitualização, Investigação, Metodologia, Visualização & Redação - revisão e edição: KCCF. Concebeu e projetou a análise; coletou os dados, realizou a análise, escreveu o artigo: Realizou a análise e escrita: WMS. Realizou a análise e escrita: ABMP. Realizou a análise e escrita: ALEA-S. Redação e aquisição de recursos e financiamento: PRS. Supervisão, redação e aquisição de recursos e financiamento: MLSV. Administração do projeto, supervisão, redação e aquisição de recursos e financiamento: APR. Todos os autores discutiram, leram e aprovaram a versão final do capítulo.
COPYRIGHT
Copyright© 2021 Freitas et al. Este é um artigo em acesso aberto distribuído nos termos da Licença Creative Commons Atribuição 4.0 Licença Internacional que permite o uso irrestrito, a distribuição e reprodução em qualquer meio desde que o artigo original seja devidamente citado.
REFERÊNCIAS
1. Kwon-Chung KJ, Boekhout T, Wickes B, Fell J. Systematics of the genus Cryptococcus and its type species C. neoformans. In: Heitman J, Kozel T, Kwon-Chung KJ, Perfect Casadevall A, editors. Cryptococcus: From Human Pathogen to Model Yeast. Washington, DC: ASM Press; 2011. DOI: https://doi.org/10.1016/S1473-3099(11)70140-2
2. Danesi P, Falcaro C, Schmertmann LJ, Miranda LHM, Krockenberger M, Malik R. Cryptococcus in Wildlife and Free-Living Mammals. J Fungi (Basel). 2021;7(1):29. DOI: https://doi.org/10.3390/jof7010029
3. Taylor-Smith, LM. 2017 Cryptococcus-epithelial adhesions. J Fungi (Basel). 2017;3(4):53. DOI: https://doi.org/10.3390/jof3040053
4. Merkel GJ, Scofield BA. The in vitro interaction of Cryptococcus neoformans with human lung epithelial cells. FEMS Immunol Med Microbiol. 1997;19(3):203-13. DOI: https://doi.org/10.1111/j.1574-695X.1997.tb01089.x
5. Barbosa FM, Fonseca FL, Holandino C, Alviano CS, Nimrichter L, Rodrigues ML. Glucuronoxylomannan-mediated interaction of Cryptococcus neoformans with human alveolar cells results in fungal internalization and host cell damage. Microbes Infect. 2006;8(2):493-502. DOI: https://doi.org/10.1016/j.micinf.2005.07.027
6. Denham ST, Brown JCS. Mechanisms of Pulmonary Escape and Dissemination by Cryptococcus neoformans. J Fungi (Basel). 2018;4(1):25. DOI: https://doi.org/10.3390/jof4010025
7. Strickland AB, Shi M. Mechanisms of fungal dissemination. Cell Mol Life Sci. 2021 Abr;78(7):3219-38. DOI: https://doi.org/10.1007/s00018-020-03736-z
8. Kawakami K. Regulation by innate immune T lymphocytes in the host defense against pulmonary infection with Cryptococcus neoformans. Jpn J Infect Dis. 2004;57(4):137-45.
9. Pereira ABM, Oliveira JR, Souza ALJ, Andrade-Silva L, Silva MV, Silva PR, et al. Effects of cigarette smoke extract on bronchial epithelial cells stimulated with Cryptococcus neoformans. Med Microbiol Immunol. 2021 Ago;210(4):221-33. DOI: https://doi.org/10.1007/s00430-021-00715-4
10. Foster KA, Oster CG, Mayer MM, Avery ML, Audus KL. Characterization of the A549 cell line as a type II pulmonary epithelial cell model for drug metabolism. Exp Cell Res. 1998 Set;243(2):359-66. DOI: https://doi.org/10.1006/excr.1998.4172
11. Merkel GJ, Scofield BA. The effects of Cryptococcus neoformans-secreted antigens on tumor necrosis factor-alpha-induced intercellular adhesion molecule-1 expression on human lung epithelial cells. FEMS Immunol Med Microbiol. 2000;29(4):329-32. DOI: https://doi.org/10.1111/j.1574-695X.2000.tb01541.x
12. Panigrahy D, Gilligan MM, Serhan CN, Kashfi K. Resolution of inflammation: An organizing principle in biology and medicine. Pharmacol Ther. 2021 Nov;227:107879. DOI: https://doi.org/10.1016/j.pharmthera.2021.107879
13. Oliveira JR, Favarin DC, Tanaka SC, Balarin MA, Teixeira DN, Levy BD, et al. AT-RvD1 modulates CCL-2 and CXCL-8 production and NF-κB, STAT-6, SOCS1, and SOCS3 expression on bronchial epithelial cells stimulated with IL-4. Biomed Res Int. 2015;2015:178369. DOI: https://doi.org/10.1155/2015/178369
14. Bingisser RM, Holt PG. Immunomodulating mechanisms in the lower respiratory tract: nitric oxide mediated interactions between alveolar macrophages, epithelial cells, and T-cells. Swiss Med Wkly. 2001 Abr;131(13-14):171-9.
15. Giard DJ, Aaronson SA, Todaro GJ, Arnstein P, Kersey JH, Dosik H, et al. In vitro cultivation of human tumors: establishment of cell lines derived from a series of solid tumors. J Natl Cancer Inst. 1973 Nov;51(5):1417-23. DOI: https://doi.org/10.1093/jnci/51.5.1417
16. Nardone LL, Andrews SB. Cell line A549 as a model of the type II pneumocyte. Phospholipid biosynthesis from native and organometallic precursors. Biochim Biophys Acta. 1979 Mai;573(2):276-95. DOI: https://doi.org/10.1016/0005-2760(79)90061-4
17. Jevnikar Z, Östling J, Ax E, Calvén J, Thörn K, Israelsson E, et al. Epithelial IL-6 trans-signaling defines a new asthma phenotype with increased airway inflammation. J Allergy Clin Immunol. 2019 Fev;143(2):577-90. DOI: https://doi.org/10.1016/j.jaci.2018.05.026
18. Li X, Liu G, Ma J, Zhou L, Zhang Q, Gao L. Lack of IL-6 increases blood-brain barrier permeability in fungal meningitis. J Biosci. 2015;40(1):7-12. DOI: https://doi.org/10.1007/s12038-014-9496-y
19. Midiri A, Mancuso G, Lentini G, Famà A, Galbo R, Zummo S, et al. Characterization of an immunogenic cellulase secreted by Cryptococcus pathogens. Med Mycol. 2020 Nov;58(8):1138. DOI: https://doi.org/10.1093/mmy/myaa012
20. Harada A, Sekido N, Akahoshi T, Wada T, Mukaida N, Matsushima K. Essential involvement of interleukin-8 (IL-8) in acute inflammation. J Leukoc Biol. 1994 Nov;56(5):559-64. DOI: https://doi.org/10.1002/jlb.56.5.559
21. Bernhard S, Hug S, Stratmann AEP, Erber M, Vidoni L, Knapp CL, Thomaß BD, Fauler M, Nilsson B, Nilsson Ekdahl K, Föhr K, Braun CK, Wohlgemuth L, Huber-Lang M, Messerer DAC. Interleukin 8 Elicits Rapid Physiological Changes in Neutrophils That Are Altered by Inflammatory Conditions. J Innate Immun. 2021;13(4):225-241. doi: 10.1159/000514885.
22. Guillot L, Carroll SF, Badawy M, Qureshi ST. Cryptococcus neoformans induces IL-8 secretion and CXCL1 expression by human bronchial epithelial cells. Respir Res. 2008 Jan;9(1):9. DOI: https://doi.org/10.1186/1465-9921-9-9
23. Manabu H, Hiroo W, Tetsuo Y, Shinichiro M, Kojiro H, Masuo N, et al. IL-10 resolves the neutrophilic inflammation in mice exposed to cigarette smoke. Eur Res J. 2021;38(Suppl 55):419. DOI: https://doi.org/10.1371/journal.pone.0058258
24. Teitz-Tennenbaum S, Viglianti SP, Roussey JA, Levitz SM, Olszewski MA, Osterholzer JJ. Autocrine IL-10 signaling promotes dendritic cell type-2 activation and persistence of murine cryptococcal lung infection. J Immunol. 2018;201(7):2004-15. DOI: https://doi.org/10.4049/jimmunol.1800070
25. Letterio JJ, Roberts AB. Regulation of immune responses by TGF-beta. Annu Rev Immunol. 1998;16:137-61. DOI: https://doi.org/10.1146/annurev.immunol.16.1.137
26. Hayden MS, Ghosh S. NF-κB in immunobiology. Cell Res. 2011 Fev;21(2):223-44. DOI: https://doi.org/10.1038/cr.2011.13
27. Shao X, Rivera J, Niang R, Casadevall A, Goldman DL. A Dual Role for TGF-β1 in the Control and Persistence of Fungal Pneumonia. J Immunol. 2005;175(10):6757-63. DOI: https://doi.org/10.4049/jimmunol.175.10.6757
28. McDermott AJ, Tumey TA, Huang M, Hull CM, Klein BS. Inhaled Cryptococcus neoformans elicits allergic airway inflammation independent of Nuclear Factor Kappa B signalling in lung epithelial cells. Immunol. 2018;153(4):513-22. DOI: https://doi.org/10.1111/imm.12853
29. Cao S, Zhang X, Edwards JP, Mosser DM. NF-kappaB1 (p50) homodimers differentially regulate pro- and anti-inflammatory cytokines in macrophages. J Biol Chem. 2006 Set;281(36):26041-50. DOI: https://doi.org/10.1074/jbc.M602222200
30. Son YH, Jeong YT, Lee KA, Choi KH, Kim SM, Rhim BY, et al. Roles of MAPK and NF-kappaB in interleukin-6 induction by lipopolysaccharide in vascular smooth muscle cells. J Cardiovasc Pharmacol. 2008;51(1):71-7. DOI: https://doi.org/10.1097/FJC.0b013e31815bd23d
31. Mercer BA, D'Armiento JM. Emerging role of MAP kinase pathways as therapeutic targets in COPD. Int J Chron Obstruct Pulmon Dis. 2006;1(2):137-50. DOI: https://doi.org/10.2147/copd.2006.1.2.137
32. Pericolini E, Gabrielli E, Bistoni G, Cenci E, Perito S, Chow SK, et al. Role of CD45 signaling pathway in galactoxylomannaninduced T cell damage. PLoS One. 2010 Set;5(9):e12720. DOI: https://doi.org/10.1371/journal.pone.0012720
33. Merkel GJ, Cunningham RK. The interaction of Cryptococcus neoformans with primary rat lung cell cultures. J Med Vet Mycol. 1992;30(2):115-21. DOI: https://doi.org/10.1080/02681219280000161
34. Choo KK, Chong PP, Ho AS, Yong PV. The role of host microfilaments and microtubules during opsoninindependent interactions of Cryptococcus neoformans with mammalian lung cells. Eur J Clin Microbiol Infect Dis. 2015 Dez;34(12):2421-7. DOI: https://doi.org/10.1007/s10096-015-2497-4
35. Casadevall A, Cleare W, Feldmesser M, Glatman-Freedman A, Goldman DL, Kozel TR, et al. Characterization of a murine monoclonal antibody to Cryptococcus neoformans polysaccharide that is a candidate for human therapeutic studies. Antimicrob Agents Chemother. 1998 Jun;42(6):1437-46. DOI: https://doi.org/10.1128/AAC.42.6.1437
36. Taylor-Smith LM, May RC. New weapons in the Cryptococcus infection toolkit. Curr Opin Microbiol. 2016 Dez;34:67-74. DOI: https://doi.org/10.1016/j.mib.2016.07.018